Eliisabeth Kuldmaa, Indrek Koppel
Eelmises numbris andsime ülevaate gliiast ehk nendest närvisüsteemirakkudest, mis ei ole neuronid. Viimastel aastakümnetel on neurobioloogid pööranud nendele rakutüüpidele üha suuremat tähelepanu. Tõuke on andnud ennekõike uurimisviiside tehnoloogilised uuendused, mis võimaldavad paremini aru saada, millises koes üks või teine huvipakkuv protsess aset leiab. Kuna eri tüüpi rakud paiknevad lootusetult läbisegi, kulgevad protsessid korraga mitmes rakutüübis või on nende omavahelise suhtlemise tulemus. See asjaolu teeb uuringud raskemaks, kuid ka põnevamaks.
Ajapikku on saanud selgemaks, milliseid ülesandeid eri tüüpi gliiarakud täidavad. Võtame vaatluse alla kolme ajus leiduva gliiarakkude põhitüübi – astrotsüütide, mikrogliia ja oligodendrotsüütide otstarbe. Ühtlasi käsitleme lähemalt oligodendrotsüütide eellasrakke, mida praegu peetakse samuti gliiarakkude tüübiks.
Astrotsüüdid, mitmekülgsed abimehed
Kaks kõige arvukamat aju gliiarakkude tüüpi on astrotsüüdid ja oligodendrotsüüdid. Alustame astrotsüütidest. Need on saanud nime tähekujulise välimuse järgi: sellisena paistsid nad algul mikroskoobis. Astrotsüüdid on üks esimesi gliiarakutüüpe, mida on 19. sajandi lõpus histoloogiliste värvingute alusel põhjalikult kirjeldanud Santiago Ramón y Cajal, rakulise neuroteaduse isa.
Astrotsüüdid kuuluvad paremini uuritud gliiarakkude hulka, neil on kirjeldatud mitu olulist ülesannet. Nad aitavad tagada sünapside ehk neuronitevaheliste kontaktide toimimise (sünaptiline homöostaas), osalevad organismi arengus sünapside loomisel, muudavad sünaptilise närviimpulsi ülekande tugevust, loovad vere ja aju barjääri (vereaju ehk hematoentsefaalne barjäär on rakuline tõkend, mis pakub ajule erikaitset kahjulike ainete ja haigustekitajate eest), reguleerivad ajus verevoolu, eemaldavad ajust jääkaineid ja koguvad neid lümfisüsteemi ning toetavad neuronite ainevahetust.
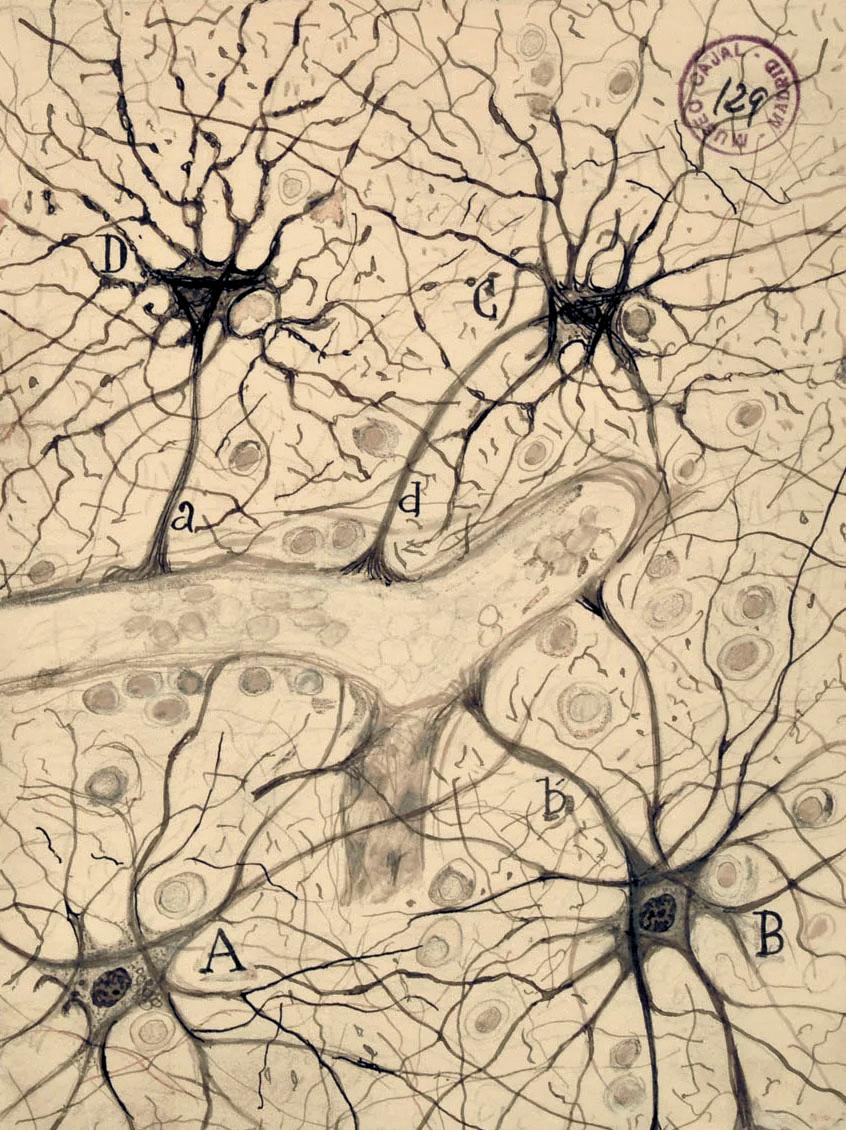
Neuroteaduse loojaks peetava Santiago Ramón y Cajali 19. sajandi lõpust pärit joonistus astrotsüütidest, mis ümbritsevad veresoont ajukoore valgeaines. CAJAL INSTITUTE, CAJAL LEGACY, CSIC
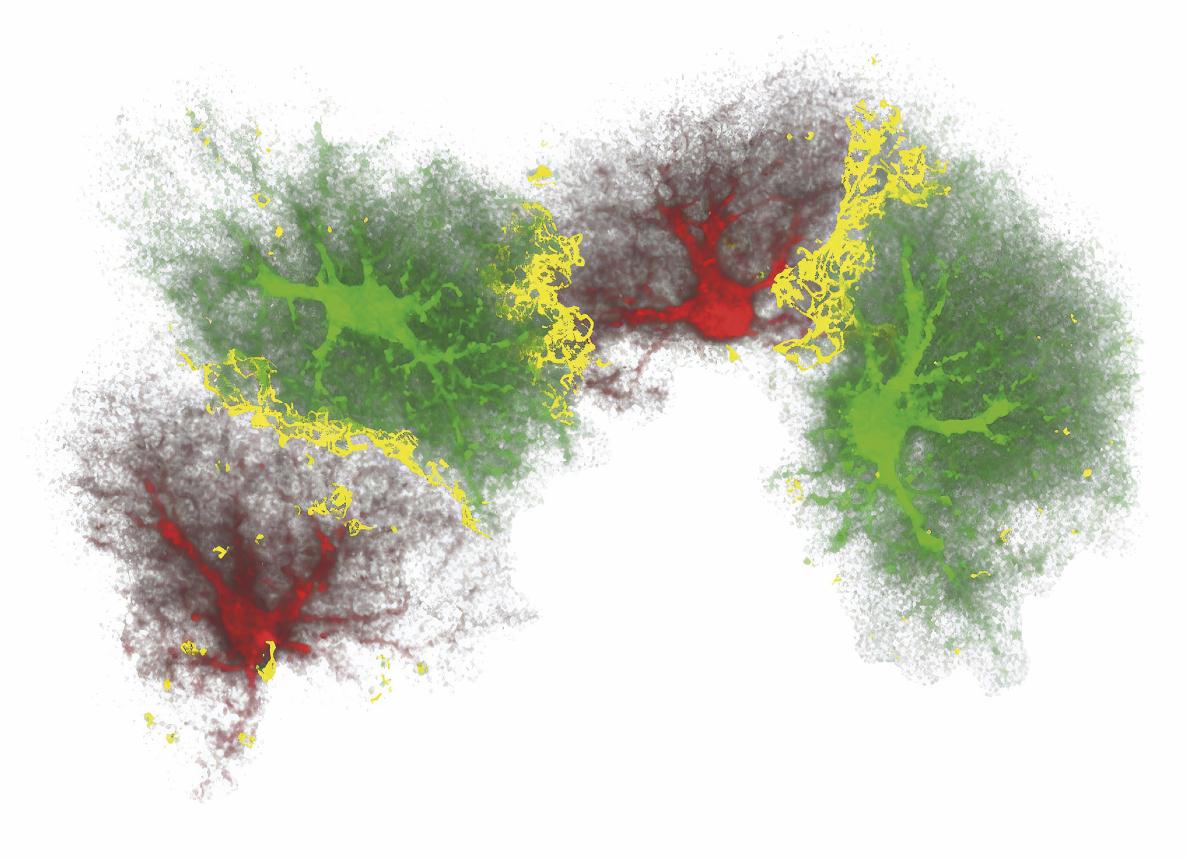
Ajakohane mikrofotograafiline 3D-rekonstruktsioon atsrotsüütidest. Astrotsüüdid on tehtud nähtavaks punase ja rohelise värviga ning tühimikud ja ühenduskohtadevahelised kommunikatsioonipiirkonnad kollasega. ALLIKAS: WILHELMSSON ET AL., 2006, PNAS
Kuna astrotsüütidel on nii palju tähtsaid ülesandeid, on neid seostatud paljude närvisüsteemi haiguslike protsessidega. Neist tuntuim ja levinuim on Alzheimeri tõbi, mida on muu hulgas seostatud astrotsüütide patoloogiatega. On uuritud Alzheimeri tõve patsientide ajusid surma järel ning märgatud astrotsüütide kuju (jämedamaks muutunud jätked) ja biokeemilise koostise muutusi. Teine väga selge vihje on apolipoproteiin E (APOE) valku kodeeriv geen. Hilise algusega Alzheimeri tõve kõige tugevamaid riskitegureid on mõningad mutatsioonid APOE-geenis. Selle geeni kodeeritud valk avaldub põhiliselt astrotsüütides, seetõttu on mutatsioonide põhjustatud molekulaarne viga suure tõenäosusega seotud just nende rakkudega.
Peale Alzheimeri tõve on leitud astrotsüütide seoseid depressiooni, skisofreenia ja teiste psühhiaatriliste häiretega. Haiguste täpsed mehhanismid ei ole teada, kuid tihti osutavad tõendite niidiotsad selgelt mõnele põletikulisele protsessile. Praegu ei tarvitata ühtegi spetsiifiliselt astrotsüütidele mõjuvat ravimit, aga tulevikus võib see teoks saada.
Vaatleme lähemalt mõnda tähtsamat astrotsüütide ülesannet. Esmalt käsitleme sünaptilist homöostaasi. Nagu neuronitel on ka astrotsüütidel palju peenikesi jätkeid. Raku keskpaigast ehk rakukehast lähtuvad jämedamat sorti jätked, mis harunevad järjest peenemaks. Harud lõpevad ülipeenikeste lõppjätketega, mis moodustavad sünapsi ümbritseva ehk perisünaptilise kapsli. Selle nn perisünaptilise jätke ülesanne on osaleda protsessis, mis taastab sünaptilise ülekande järel sünapsis paiknevate ioonide ja virgatsainete algkontsentratsioonid. Allpool oleval joonisel on see protsess esitatud aju kõige levinuma sünapsitüübi ehk glutamaatergilise sünapsi (kasutab virgatsainena aminohapet glutamaat) näitel. Niisugune sünaptiline majapidamistöö peab käima lakkamatult ja kui selles tuleb ette häireid, on tagajärjed halvad. Näiteks võimetus haarata astrotsüüdi lõppjätketesse piisavalt glutamaati toob kaasa glutamaatergiliste sünapside üleergastamise, mis võib ajendada epilepsia tekke. Päriliku epilepsia põhjustajana on teada mitu mutatsiooni astrotsüüdis toimetava glutamaadi transporteri geenis.
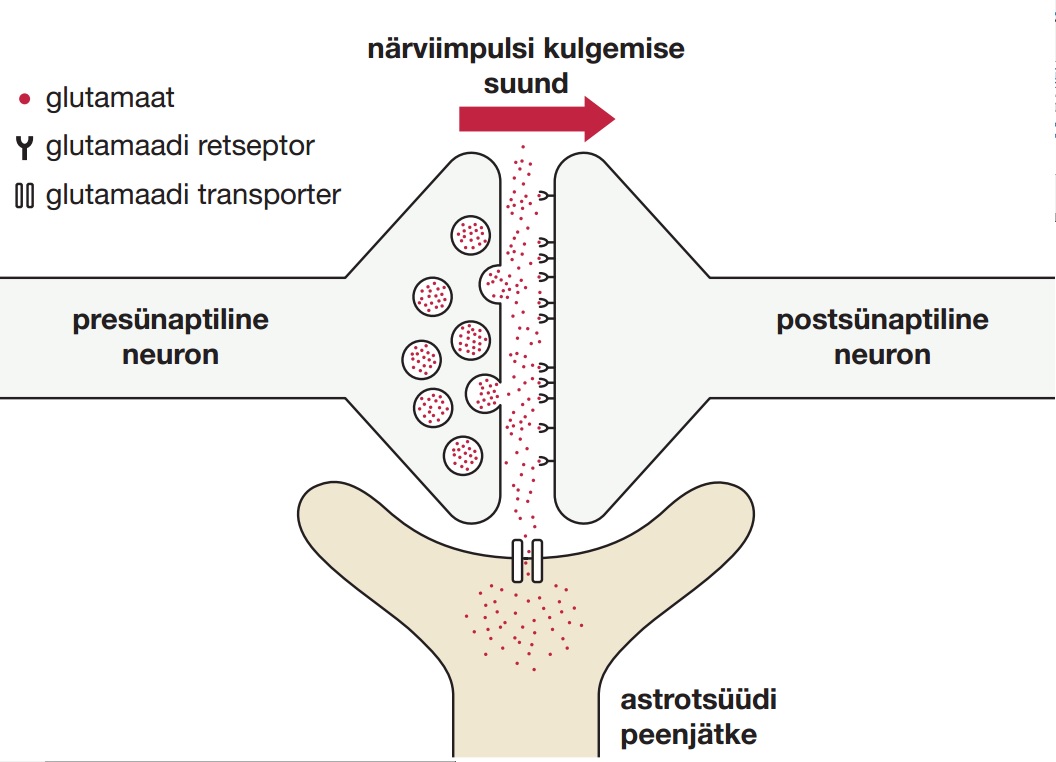
Kahest neuronist ja astrotsüüdist koosnev kolmeosaline sünaps: neuronite kokkupuutepunkt, kus närviimpulss kandub ühelt neuronilt teisele. Närviimpulss muundatakse elektrilisest keemiliseks virgatsainete kaudu. Joonisel on virgatsainena kujutatud glutamaati kui neist levinuimat. Glutamaat on koondunud presünaptilisel poolel põiekestesse, mis vabastavad impulsi käigus oma sisu sünaptilisse pilusse. Glutamaat seostub asjaomase retseptormolekuliga, mille tõttu muundatakse sünaptiline vastus uuesti elektriliseks. Viimastel aastakümnetel on välja kujunenud ettekujutus sünapsist kui kolme rakulise poolega struktuurist: peale kahe neuroni osalevad selles astrotsüüdid, mille jätked ümbritsevad sünapsi. Joonisel olevat astrotsüüdijätket tuleb kolmemõõtmelises ruumis ette kujutada nõnda, et ta ümbritseb neuronitevahelist kontakti. Üks astrotsüütide oluline roll sünaptilises ülekandes on eemaldada liigne glutamaat rakkudevahelisest ruumist. Niisugune mehhanism tagab selle, et sünaps on valmis vastu võtma uut impulssi ehk informatsiooni
Astrotsüüdid etendavad suurt osa ka teises võtmetähtsusega funktsioonis – aju energiavahetuses. Kehamassist ainult paar protsenti hõlmav aju kulutab kogunisti viiendiku meie omastatud energiast. Neuronite jagu on sellest energiast umbes 80–90%, sellest omakorda suurem osa tarvitatakse sünaptilistes infoülekannetes. Kummalisel kombel tarvitavad neuronid ainult umbes poole aju põhilisest energiaallikast glükoosist, ja teise poole kasutavad ära gliiarakud.
Ühtlasi on teada, et astrotsüütides paikneb suurem osa aju glükogeenist. Glükogeen ehk nn loomne tärklis on rakkudes glükoosi varuaine, mida rakendatakse siis, kui veres pole piisavalt glükoosi. Selline olukord energiamajanduses tekitab silmatorkava vastuolu: neuronid tarvitavad suurema osa energiast, aga ainult poole glükoosist. Kuidas see energiapuudujääk kaetakse?
Säärase ebakõla põhjal on oletatud, et gliiarakud pakuvad energiaablastele neuronitele tugiteenust, mis aitab nende elektrilisi protsesse sujuvalt käigus hoida. Oluline metaboliit, mille kaudu energiat üle kantakse, näib olevat piimhappe ioonvorm ehk laktaat, millega varustavad neuroneid põhiliselt astrotsüüdid. Neuronites kasutatakse laktaati energiarikka molekulina, mille varal saab sünteesida põhilist energeetilist valuutat – ATP-d. Mitme teadustöö põhjal on praeguseks kindlaks tehtud, et astrotsüütidelt neuronitele suunatud laktaaditranspordi häirumisel saab katsehiirtel kannatada pikaajaline mälu.
Mikrogliia – aju immuunrakud
Mikrogliia on gliiarakkude tüüp, mis on saanud nime suhteliselt väikeste rakukehade järgi, nad täidavad aju kohapealsete immuunrakkude ülesannet. Nende puhul torkab silma asjaolu, et nad paiknevad teiste närvisüsteemirakkudega võrreldes ajus väga ühtlaselt (erinevalt näiteks neuronitest, mis võivad asetseda üksteise kõrval tihedamalt või hõredamalt). Mikrogliia rakukehast ulatuvad välja pidevalt liikuvad jätked. Kui juuresoleval pildil olevatest rakkudest teha tunnipikkune video ning esitada see kiirendatult kümne sekundi vältel, võiks näha täiesti kepsakaid tantsuliigutusi. Nende liigutustega kobab mikrogliia oma ümbrust, et märgata patogeene või koekahjustusi. Kui need valvurrakud panevad tähele midagi kahtlast, annavad nad keemilisi signaalmolekule eritades teistele rakutüüpidele häiret ning võivad liikuda kahjustunud koepiirkonda, et see mikrokeskkond tervest koest isoleerida. Mikrogliia rakud on võimelised fagotsüteerima ehk alla kugistama end ümbritsevaid kahjulikke või ebavajalikke osakesi: rakuprügi, surnud rakke ja haigustekitajaid, mis võivad olla sattunud kesknärvisüsteemi.
Kuna ajukoes puudub võimalus kasutada antikehadel põhinevat immuunkaitset, on mikrogliia kanda eriti suur vastutus, et patogeenidele kiiresti reageerida ja nad kahjutuks teha. Mikrogliia neelamisvõimele on loodus leidnud ka teise kasuliku rakenduse sünapside kärpijana. Arengu käigus tekib igaks juhuks palju rohkem sünaptilisi kontakte, kui lõpuks kasutusele võetakse. Ülearuste sünapside eemaldamisel on olulisel kohal mikrogliiarakud, mis nad alla kugistavad, lagundavad ja võimaldavad selle käigus tekkinud molekulaarseid ehituskive taaskasutada, loomaks uusi rakulisi struktuure.
Kui imetaja aju vananeb, toimuvad mikrogliiarakkudes mitmesugused muutused, näiteks väheneb jätkete liikuvus ja neelamisvõime – mikrogliia muutub oma põhiülesannete täitmisel laisemaks. Nagu astrotsüütidel muutub ka mikrogliia olemus vanusega põletikulisemaks, aga neurodegeneratiivsete haiguste korral on põletikulised protsessid eriliselt võimendunud. Alzheimeri tõve patsientide ajukoes on tihti märgatud nn düstroofilist mikrogliiat. Need on tükeldunud või köndistunud jätketega mikrogliiarakud, millel on taandunud neuroneid kaitsvad omadused ning võimendunud kahjulikud, põletikku tekitavad omadused.
Oligodendrotsüüdid – neuronite elektriisolatsioon
Kesknärvisüsteemi gliiarakkude alla kuuluvad veel oligodendrotsüüdid. Nende rakkude peamine ja ülitähtis funktsioon on võimaldada signaalide kiiret ja täpset ülekannet kesknärvisüsteemis – pea- ja seljaajus. Selle saavutamiseks mähivad oligodendrotsüüdid oma haralised pikad jätked ümber aksonite, moodustades tihedalt pakitud isoleerivaid müeliintuppesid. Lipiidirikas müeliin toimib samamoodi kui elektrikaabli ümber olev isolatsioonikiht: mõlemad tagavad, et edastatav impulss ei lekiks ega hajuks keskkonda, ja leviks kiiresti sihtkohta.
Ent müeliinkiht ei kata aksonit täielikult, vaid selle vahel paiknevad Ranvier’ sõlmed, kus närviimpulss justkui taaselustub, tagades signaali kohalejõudmise sihtmärkrakuni. Seda nähtust kutsutakse hüppe- ehk saltatoorseks juhtivuseks, sest elektriline signaal näib aksonil ühelt Ranvier’ sõlmelt teisele hüppavat. Seesugune lahendus võimaldab närvisüsteemil reageerida erutusele murdosa sekundiga ja edastada signaale mööda pikki närvikiude, juhtides meie liigutusi, aistinguid ja mõtteid. Tänu oligodendrotsüütide loodud müeliinkihile saavad neuronite aksonid olla peenikesed, kuid väga tõhusad. Seetõttu saab kesknärvisüsteem olla kompaktne, kuid andmetöötluse poolest võimas. Ilma oligodendrotsüütideta ei oleks inimese nägemisnärvi läbimõõt mitte 5 millimeetrit, vaid 0,75 meetrit!
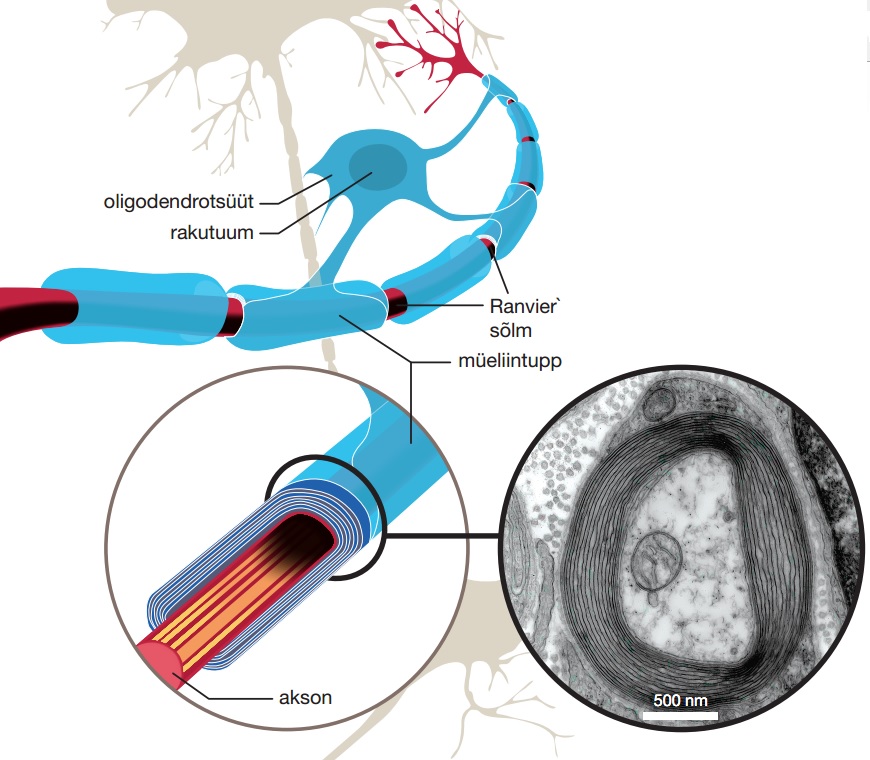
Oligodendrotsüüdid. Joonise vasakpoolsel osal on näidatud, kuidas neuroni jätket (punast aksonit) ümbritseb müeliinkiht (sinine). Müeliin on aksonites kulgevate elektriimpulsside elektriline isolaator ning moodustub rakumembraani lehtedest, mis sopistuvad välja oligodendrotsüütidest ja keerduvad aksonite ümber rulli. Paremal on transmissioonelektronmikroskoopia ülesvõte müeliinkihist aksoni ümber. Pildil on müeliniseeritud akson ristlõikes, kus lipiidirohke müeliinkiht paistab tumeda triibulise ümbrisena. All paremal olev mõõtjoon vastab 500 nanomeetrile ehk 1/2000 millimeetrile. ROADNOTTAKEN / WIKIPEDIA
Aksonite müeliiniteke algab vahetult enne sündi ning jätkub kogu lapse- ja täiskasvanueas, iseloomustades aju elukestvat plastilisust ja õppimisvõimet. Uute müeliintuppede moodustumine oleneb närvivõrkude kujunemisest ja nende suurenenud aktiivsusest. Oligodendrotsüüdid toetavad neuronite elujõulisust ja kaitsevad nende aksonite struktuurset terviklikkust. Üks oligodendrotsüüt võib oma jätketega mähkida 20–60 aksonit, tagades niimoodi tohutu hulga närvikiudude koordineeritud tõhusa töö. Ühtlasi tagavad oligodendrotsüüdid metaboolse toe aksonite müeliniseeritud piirkondadele, tagades toitainete kättesaadavuse.
Oligodendrotsüütide hulk ja müeliniseerimisvõime halveneb loomulikul teel, kui organism vananeb, aga ka haiguste korral. Üks selline on hulgiskleroos, mis on autoimmuunne põletikuline demüeliniseeriv haigus. Haiguse täpne põhjus on selgusetu, arvatavasti tekivad müeliinivastased patoloogilised autoantikehad pärast mõne haiguse läbipõdemist, kus haigustekitaja (näiteks viiruse) koostisesse kuuluvad valgud sarnanevad müeliinvalkudega. Kui immuunsüsteem toodab haigustekitaja vastu spetsiifilisi antikehasid, võivad need hiljem rünnata hoopis müeliintuppesid ning ajendada immuunrakke – T-rakke ja mikrogliiat – neid hävitama.
Müeliini hävitamise tõttu astrotsüüdid ja neuronid taandarenevad ning kaotavad järjest oma funktsioone. Kuigi iga hulgiskleroosi haigushoo järel müeliin teatud määral taastub, pole müeliinkihi taastumine kunagi täielik ega päris kvaliteetne. Taastumine oleneb immuunvastuse levikust, kahjustuse ja armistumise suurusest ning oligodendrotsüütide eellasrakkudest.
Oligodendrotsüütide eellasrakud
Ilmselt kõige salapärasem gliiarakutüüp on oligodendrotsüütide eellasrakud ehk OPC-d (ingl oligodendrocyte precursor cells). OPC-sid on raske uurida nende muutlikkuse tõttu: rakkude kuju ja ülesanne oleneb nende asukohast ajus ning teistest rakkudest tulenevatest signaalidest. OPC-de põhiülesanne on eristuda müeliini tootvateks oligodendrotsüütideks. See on eriti oluline aksonite taasmüeliniseerimisel pärast nende kahjustumist. Tähtja kujuga ja harunenud jätketega OPC-sid leidub kogu kesknärvisüsteemis, nii valge- kui ka hallolluses. OPC-sid iseloomustab omamoodi territoriaalsus: igal OPC-l on oma valdus, mida ta haldab ja valvab, ning see määratakse juba varajase arengu käigus. Juhul kui üks OPC sureb või eristub oligodendrotsüüdiks, täidab tühjaks jäänud piirkonna kiiresti uus OPC.
OPC-d on koostööaltid, muutes oma kuju ja rolli neuronitelt, astrotsüütidelt, mikrogliialt ja oligodendrotsüütidelt saadud signaalide põhjal. Huvitaval kombel on OPC-del veel omapärane võime luua neuronitega sünapse. Ükski teine rakutüüp peale neuronite ja OPC-de selliseid kontakte ei moodusta. Tänini pole teada, mis on niisuguste sünapside otstarve.
Kesknärvisüsteemi vigastusele reageerivad esmajärjekorras immuunrakud, astrotsüüdid ja mikrogliia, mis loovad vigastuse lähedusse põletikulise keskkonna. Sellest keskkonnast lähtuvad mitmesugused signaalid suunavad OPC-d jagunema ja liikuma vigastuskohale, kus nad hakkavad vigastusest taastumiseks ette valmistama neuroneid. Selleks eristub osa OPC-sid müeliniseerivateks oligodendrotsüütideks ning ülejäänud jäävad vigastuseelset keskkonda taaslooma. Närvivigastusprotsessid on keerulised: eri paranemisfaasides võib OPC-del ilmneda nii neuronite kasvu ja müeliiniteket toetavaid kui ka takistavaid omadusi. Ilmselt on tähtis liiga varajast taastumist takistada, et neuronid ei hakkaks enneaegu looma valesti talitlevaid ühendusi. OPC-d pakuvad uurijatele suurt huvi, sest aitavad mõista, kuidas oleks võimalik kesknärvisüsteemis vigastusest taastumist hõlbustada.
Eliisabeth Kuldmaa (2003) on Tallinna tehnikaülikooli rakenduskeemia ja biotehnoloogia magistrant.
Indrek Koppel (1982) on Tallinna tehnikaülikooli keemia ja biotehnoloogia instituudi neurokeemia nooremprofessor.
Artikkel ilmus ajakirja Horisont 6/2025 numbris.